Материал: 4673

Вывод. Следовательно, на основании испытания материнских деревьев по их семенному потомству можно предполагать, что аддитивное участие генов в изменчивости сеянцев по их высоте довольно высоко (46 %), хотя изучению подвергалось полусибовое потомство.
Из-за сильного материнского эффекта значения h2, вычисленные таким способом, часто искажаются. Иногда получаются минусовые значения h2 и больше 1 по следующим причинам:
1)при сильном взаимодействии генотипа со средой. Если разные генотипы реагируют на изменения среды не одинаково, то потомство генотипически лучших деревьев может расти в новых условиях не лучше, а даже хуже, чем потомство минусовых деревьев. В этом случае коэффициент корре-
ляции между высотами родителей и потомств будет отрицательной, следовательно, отрицательный и h2;
2)при возникновении сильных эффектов от взаимодействия родитель-
ских генов в потомстве. Например, при взаимодействии генов двух средних по росту родителей возникает гетерозисное потомство. Тогда rop и h2 также могут быть отрицательными.
Выполнение задания. На полученные от преподавателя параметры сеянцев полусибового потомства плюсовых деревьев и параметры материнских деревьев выполнять расчет коэффициента наследуемости в узком смысле (h2). Сделать вывод об обусловленности изучаемого признака наследственным фактором и условиями внешней среды.
РАБОТА 8 Генетическое равновесие в свободно скрещивающейся популяции при учете одной пары аллей
Закономерность, которой должно подчиняться в панмиктической популяции распределение частот трех генотипических классов, контролируемых двумя аллелями одного аутосомного гена, была установлена в 1908 г. независимо друг от друга английским математиком Г. Харди и немецким медиком В. Вайнбергом. Внесем в решетку Пеннета частоты двух классов гамет с аллелями А и а, принимая свободное их комбинирование как результат случайного скрещивания родительских особей в панмиктической популяции.
Частоты гамет у |
р (А) |
q(а) |
|
маточных деревьев |
|||
|
|
||
|
|
|
|
р(А) |
р2(АА) |
pq(Аа) |
|
g(а) |
рq(Аа) |
q2(aa) |
Запишем частоты генотипических классов в потомстве. Просуммируем эти частоты, имея в виду, что их сумма, как и сумма частот аллелей p q , по определению, равна 1 (или 100 %):
p2(AA)2pq(Aa)q2(aa)1
Это выражение получило название закона, или правила ХардиВайнберга. Оно есть результат возведения в квадрат двучлена p q 2 . Этот закон дает возможность определить вероятность содержания генотипов АА, Аа, аа в свободно скрещивающейся популяции.
Задание 1
1)Познакомиться с законом Харди-Вайнберга.
2)Вычислить частоты генотипов в популяции сосны обыкновенной Усманского бора, растения которой различаются по окраске семян.
Материал и оборудование:
1.Семена сосны обыкновенной.
2.Бумага
3.Карандаш
4.ЭКВМ.
Пояснения к заданию. У сосны обыкновенной черная окраска семян – доминантный признак (А), по отношению к белой (а) окраске, N – число особей в популяции, D – число гомозиготных особей с генотипом АА, R – число гомозиготных особей с генотипом аа, Н – число гетерозиготных особей с генотипом Аа.
Выполнение задания
1.Определить состав популяции. Он будет представлен следующей формулой: N D R H.
2.Вычислить число генов А и число генов а в данной популяции сосны обыкновенной по формуле А (число генов) = 2D+H, так как каждое растение D имеет два гена А, а каждое растение Н – один ген А.
Число генов а = 2R+H, так как каждое растение R имеет два гена а, а каждое растение Н – один ген.
3.Вычислить частоту (долю) генов А в популяции сосны. Она обозначается буквой р и вычисляется по формуле
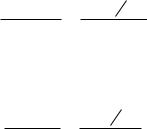
2DHD1H
р 2N N2 .
4. Вычислить частоту генов в популяции по формуле
2RHR1H q 2N N2 .
5. Пользуясь формулой Харди-Вайнберга, вычислить состояние равновесия в популяции при р=0,6 и q=0,4 и частоте генотипов АА=0,10, Аа=0,20 и
аа=0,70.
Выполнение задания. Каждый студент выполняет задание самостоятельно, и после чего получает индивидуальное задание и вычисляет состояние равновесия в популяции при определенных частотах р и q. Сделать вывод.
В предложенном примере в популяции сосны обыкновенной во всех поколениях сохраняется соотношение генотипов с черной окраской семян АА=0,36, гетерозигот Аа=0,48 и с белой окраской аа=0,16. При этом сохраняется частота гена А – р = 0,6 и частота гена а – q = 0,4.
РАБОТА № 9. Применение изоферментного анализа при изучении гетерогенности природных популяций
Химические реакции в живых организмах осуществляются при помощи катализаторов – ферментов. Ферменты – глобулярные (сферической формы) белки. В белках встречается двадцать типов аминокислот, чередование которых в белковой цепи определяет специфику фермента, то есть его биологическую функцию. Фермент подходит к субстрату, как ключ к замку. В настоящее время известно около 2000 ферментов, многие из них получены в кристаллической форме.
Строение молекулы пероксидазы. Пероксидаза – двухкомпонентный фермент, состоящий из активной группы, вступающей в химическое взаимодействие с субстратами, и коллоидального белкового «носителя», усиливающего каталитическое действие этой группы. Это глобулярный белок диамет-
ром 50 Ǻ (Clementi, Palade, 1969).
Цели и задачи изоферментного анализа. Изоферментный анализ позво-
ляет проводить характеристику растительных форм как в соматических, так и в репродуктивных тканях. Известно, что в исследуемых образцах формы ферментов экспрессируются кодоминантно, в отличие от полного и неполного доминирования (Менделевские признаки) морфологических признаков,

которые проявляются иногда через скрытую форму. Кодоминирование – это явление, когда оба аллеля дают равноценный вклад в формирование фенотипа. Кодоминирование обычно выявляется на электрофореграммах ферментов. Это один из путей получения информации о генотипе, и он может служить для выявления полиморфизма белков. Задача данной работы состоит в том, чтобы познакомить студентов с изучением индивидуальной изменчивости у древесных растений.
Задание 1. Изучить различные формы березы по системам размножения (самофертильные, самостерильные формы).
Материал и оборудование.
1.Вертикальная электрофоретическая камера;
2.Источник постоянного электрического тока;
3.Набор реактивов;
4.Зимние почки разных форм березы повислой по уровню самофертильности;
5.Препаровальные иглы.
Методика для экстракции белков. Растительный материал (навески листьев) студенты растирают в предварительно охлажденной фарфоровой ступке в равном объеме (масса/объем) 100 мМ трис-HCl буфера, pH 7,5, содержащем в качестве защитной добавки и создания антиконвекционной среды 20% сахарозу. Гомогенат центрифугируют (5′) при 8000 об/мин. В качестве лидирующего красителя используют БФС. До вхождения белковых образцов в разделяющий гель электрофорез проводили при постоянном токе 20 мА, затем – 40 мА. Электрофорез завершают, когда бромфеноловая метка достигала нижнего анодного конца гелей. Разделение белков проводят с помощью вертикального дискового электрофореза в трубках полиакриламидного геля при 4°С в непрерывной системе, описанной Дэвисом (Davis, 1964). Пероксидазную активность в гелях определяют с использованием бензидина. Гели после окрашивания фотографируют. Для удобства интерпретации разделяющий гель условно поделен на 3 зоны:
Медленно движущиеся изоформы - S (slow) Rf = 0 – 0,25
Изоформы с промежуточным типом движения – I (intermediate) Rf = 0,26 – 0,5
Быстро движущиеся изоформы – F (fast) Rf = 0,51 – 0,75.
Определение Rf (относительной подвижности изоформы фермента в геле)
Для получения приведенных значений (универсальных для считывания)
а х
применяли формулу Rf 0,75 ;
где а – длина дорожки, мм; х – определяемая (универсальная) длина дорожки, мм;
0,75 – коэффициент, равный длине электрофоретической трубки (подбирается эмпирически);
Экспериментальная часть.
Отобрать почки с каждой формы березы, 1-3 – самофертильные формы, 2 – самостерильная форма.
1.1 н HCl – 48,0 мл; Трис – 36,6 г; TEMED – 0,23 мл;
2.Акриламид – 30,0 г; МБА (метиленбисакриламид) – 0,8 г;
3.ПСА (Персульфат аммония) – 0,14 г;
Растворы для приготовления концентрирующего геля:
4.1 н HCl – 48,0 мл; Трис – 5,98 г; TEMED – 0,46 мл; pH 6,7
5.Акриламид – 10,0 г; МБА – 2,5 г;
6.РФ (рибофлавин) 4 г;
7.Сахароза – 40%;
Электродный буферный раствор:
Трис – 6,0 г; Глицин 28,8 г; используют 10% водный раствор. Проявление гелей на пероксидазу:
Приготавливают два раствора, а) и б) а) 1. Бензидин – 100 мг;
2.CH3COONa – 6 г;
3.ЛУК (ледяная уксусная кислота) 3 мл (подогреть);
4.С2Н5ОН (пищевой) – 50% - 100 мл;
Порядок приготовления: 1-3-2-4, хранится в темноте.
б) Н2О2 – 0,98 мл; Н2О – до 100 мл;
Смешать перед проявлением 1 ч. а) + 1 ч. б); Функция концентрирующего геля – соответственно концентрирует со-
держимое кармана ( экстрагирующий буфер с ферментом + краситель) для дальнейшего прохождения и сегрегации изоформ на следующей стадии – стадии разделения.
Разделяющий гель – дифференцирует фракции ферментов по их электрическому заряду и/или по молекулярной массе.
Приготовление растворов. Растворы для приготовления разделяющего геля (Таблица 7.4).